

Les associations de cultures augmentent la diversité des systèmes de culture, mais est-ce que cet effet persiste après l’abandon de cette pratique ?
Gaëtan Seimandi-Corda *, Maé Guinet **, Lionel Alletto *
* Université de Toulouse, INRAE, INPT, El PURPAN, AGIR, Castanet-Tolosan, France
** Université de Bourgogne Europe, Institut Agro Dijon, INRAE, UMR Agroécologie, Dijon, France

Résumé
Les associations de cultures présentent des bénéfices écologiques en conditions expérimentales, mais leurs effets réels sur la diversité des systèmes de culture restent peu étudiés. Cette étude évalue leur influence à partir du réseau DEPHY, sur 414 systèmes conventionnels et biologiques. L'adoption a augmenté la richesse spécifique (+52%), l'indice de diversité de Shannon (+22%) et l'équitabilité (+9%), ceci surtout grâce à la hausse de la présence des légumineuses (+96%) et la baisse des céréales (-19%). Les mélanges dominants étaient composés de céréales-légumineuses. 40% des systèmes étudiés ont abandonné la pratique, réduisant leur diversité ; dans 92% des systèmes, des espèces (surtout légumineuses et cultures mineures) ont disparu après l’abandon de la pratique. L'association de cultures diversifie donc efficacement les systèmes en conditions réelles, mais ses bénéfices durables sur la composition du système de culture restent limités par la faible persistance des espèces lorsque la pratique est abandonnée.
Mots clés : diversification, association de cultures, agronomie, réseau DEPHY, France.
Abstract
Intercropping, growing multiple plant species simultaneously on the same field, provides clear ecological benefits in experimental settings. However, its implementation in real farms and its impacts on crop diversity and composition of the cropping-system remain understudied. This study aimed at assessing how intercropping influences cropping-system diversity. Data from the French DEPHY network, > 2 000 farms monitored since 2010, were used to track changes in crop diversity and composition in different crop families before, during, and after intercropping was implemented. We analysed 414 cropping systems, both conventional and organic. Intercropping resulted in a significant increase of 52% in species richness, 22% in Shannon diversity, and 9% in evenness at the cropping-system level, mainly due to an increase of 96% in the proportion of legumes and reduced proportion of 19% of cereals. Farmers intercropped mainly cereals with legumes, representing 90% of mixtures in organic systems, and 66% in conventional systems. Of the 414 systems studied, 40% abandoned intercropping at some point during the survey, which resulted in a decrease in diversity and the proportion of legumes. In 92% of the systems when intercropping was abandoned some species were lost in the system, especially legumes and minor crops. These results demonstrate that intercropping can diversify cropping systems effectively under real farming conditions, particularly by reintroducing legumes, but its long-term benefits on diversity are limited by the low persistence of species when intercropping is abandoned.
Introduction
La diversification des systèmes de culture est de plus en plus reconnue comme une stratégie clé pour construire des systèmes agricoles plus durables et résilients (Alletto et al., 2022). Elle englobe un large éventail de pratiques, notamment l'allongement des rotations, les associations de cultures, l'agroforesterie, les couverts d’interculture et les mélanges de variétés. Ces pratiques augmentent le nombre de cultures différentes cultivées dans le temps ou dans l'espace, ainsi que la complexité structurelle et fonctionnelle des agroécosystèmes (Duru et al., 2015). Les changements de composition peuvent avoir une forte influence sur la performance agronomique et la gestion de la fertilité des sols et des ravageurs. De nombreuses études ont montré que la diversification des cultures présente de nombreux avantages et soutient des services écosystémiques clés, notamment la régulation des ravageurs et maladies, le cycle des nutriments, la qualité de l'eau et l'érosion des sols (Beillouin et al., 2021 ; Tamburini et al., 2020), le tout sans compromettre les rendements, ce qui fait de la diversification une stratégie efficace pour accroître la résilience et réduire les impacts environnementaux de l'agriculture.
Parmi les stratégies de diversification, les associations de cultures, dans lesquelles plusieurs espèces végétales sont cultivées simultanément dans la même parcelle, constituent une option prometteuse pour l'intensification écologique et la réduction des intrants. Les associations de cultures ont été largement étudiées, en particulier pour les mélanges céréales-légumineuses, et leurs bénéfices ont été démontrés dans de multiples méta-analyses. Par exemple, il a été observé que les associations de cultures réduisent significativement la pression des adventices, en particulier lorsque les cultures ont une faible compétitivité face à ces bioagresseurs (Gu et al., 2021), et augmentent le contrôle des ravageurs et maladies (Beillouin et al., 2021 ; Yousefi et al., 2024), l'activité biologique des sols (Curtright and Tiemann, 2021), ainsi que la stabilité des rendements (Raseduzzaman and Jensen, 2017). La complémentarité entre espèces pour l'utilisation des ressources (lumière, azote et eau) constitue un mécanisme clé de ces résultats positifs (Gu et al., 2021 ; Zhang et al., 2025). Les légumineuses, en particulier, apportent une valeur ajoutée aux associations de cultures car elles fixent l'azote atmosphérique et améliorent la performance de la culture suivante.
Malgré ce solide corpus de preuves, peu d'agriculteurs cultivent des associations de cultures, en particulier dans les pays occidentaux. En France, les mélanges céréales-légumineuses ne couvraient que 44 000 ha en 2021 (“Agreste,” 2023). Les freins à l'adoption de ces pratiques incluent des connaissances techniques limitées par rapport aux cultures simples, le refus des collecteurs de collecter des mélanges de graines, ainsi que l'absence de variétés adaptées aux systèmes de culture avec des associations (Jensen et al., 2020 ; Mamine and Farès, 2020 ; Morel et al., 2020). De plus, les outils de mécanisation et de traitement post-récolte standards possédés par les agriculteurs sont souvent mal adaptés à la gestion des associations de cultures. Relever ces défis peut nécessiter une refonte des systèmes de culture car l'ajout de nouvelles cultures influence les rotations, la rentabilité du système et d'autres aspects agronomiques.
Actuellement, on dispose de peu d'informations sur la manière dont les associations de cultures sont adoptées dans les systèmes de grande culture en Occident et sur les effets de leur mise en œuvre sur les modifications du système de culture. Aucune étude à ce jour n’a montré si les associations de cultures augmentent la diversité végétale des systèmes de culture, si les espèces associées sont également présentes en culture pure ou sont ajoutées spécifiquement pour l'association, ni si de nouvelles cultures sont introduites. En particulier, la culture de légumineuses en association pourrait réduire leur utilisation en culture pure dans les rotations afin d'éviter des retours trop fréquents de cette famille de cultures.
Dans cette étude, nos objectifs sont multiples : 1) identifier les espèces présentes et analyser leur assemblage dans les associations de cultures en France ; 2) déterminer comment leur adoption influence les indices de diversité au niveau du système de culture ; 3) caractériser l’importance relative des différentes familles botaniques dans chaque système de culture ; 4) déterminer si les agriculteurs ajoutent des espèces lors de l’adoption des associations de cultures par rapport à leur système initial, et si ces espèces demeurent dans le système après l’abandon de la pratique.
Pour ce faire, nous avons utilisé les données collectées pour le réseau DEPHY (Lechenet et al., 2016). Ce réseau d'exploitations existe depuis 2010 en France et compte environ 2000 agriculteurs volontaires intéressés par la réduction de l'usage des pesticides. Les agriculteurs sont accompagnés localement par des ingénieurs réseau, et certains d'entre eux adoptent les associations de cultures, principalement avec le blé, l'orge, le colza et le pois (Yan et al., 2024). Nous avons utilisé ce jeu de données à grande échelle pour analyser les séquences temporelles d’associations de cultures définies par des phases distinctes (c'est-à-dire pré-adoption, adoption et post-abandon), afin d'étudier comment les agriculteurs mettent en œuvre des associations de cultures et d'évaluer les effets de l’introduction de ces associations sur la diversité et la composition des systèmes de culture.
Matériels et méthode
Le réseau DEPHY et la base de données AGROSYST
Le réseau DEPHY est un réseau d'exploitations agricoles, mis en place dans le cadre du plan Ecophyto, qui vise à réduire l’utilisation de pesticides en France. Le réseau est actif depuis 2010 et a compté jusqu'à 3000 agriculteurs. Cet effectif varie toutefois d’une année à l’autre en fonction des recrutements et des départs, avec environ 2 000 agriculteurs participant plus récemment au réseau. Les agriculteurs participent au réseau sur la base du volontariat, sans compensation financière, avec pour objectif commun de réduire l'usage des pesticides tout en maintenant la rentabilité de leur exploitation. Les participants sont organisés en groupes locaux de 10 à 15 agriculteurs, accompagnés par un ingénieur réseau qui les guide dans l'adaptation de leurs pratiques afin de réduire l'usage des pesticides. Ces ingénieurs réseau collectent également des données sur les pratiques agricoles des exploitants, et ces données sont ensuite stockées dans la base de données AGROSYST (Ancelet et al., 2015). Les pratiques agricoles sont suivies annuellement selon deux approches : 1) de façon « réalisée », à l'échelle de parcelles individuelles, et 2) de manière synthétique, où chaque culture de la rotation est décrite comme la moyenne de plusieurs parcelles cultivées avec la même culture au cours d'une même année. Nous avons utilisé les données d’AGROSYST, en nous concentrant sur les exploitations de grande culture et de polyculture-élevage, qui à elles deux représentent environ la moitié des exploitations suivies dans le réseau.
Nous avons défini les associations de cultures comme tout mélange d'espèces végétales cultivées simultanément pendant tout ou partie de leur cycle, en excluant les prairies (temporaires ou permanentes) et les couverts d’interculture. Les associations de cultures incluaient à la fois les mélanges destinés à la consommation humaine, les méteils récoltés frais ou secs, ainsi que les cultures principales associées à des plantes compagnes (cultures non récoltées associées à une culture de rente pour fournir des services). Nous avons analysé chaque système de culture, défini comme un ensemble de parcelles présentant la même rotation de cultures et les mêmes règles de décision au sein d'une même exploitation sur plusieurs années, ayant inclus au moins une parcelle en associations de cultures au cours d'une année. Selon cette approche, 414 systèmes de culture suivis entre 2009 et 2024 ont été identifiés dans le jeu de données obtenu au 14 mai 2024. Seuls les systèmes de culture suivis pendant au moins trois ans ont été utilisés afin de pouvoir identifier les changements temporels entre les années. La durée médiane du suivi des 414 était de 6 années.
Nous avons ensuite identifié les systèmes de culture sur la base de trois phases d'adoption des associations de cultures : 1) pré-adoption, avant le début de l'utilisation d’associations de culture ; 2) adoption, de la première à la dernière année d'utilisation ; et 3) post-abandon, après l'arrêt de la pratique. Tous les systèmes n'ont pas connu les trois phases : certains n'en contenaient que deux, tandis que d'autres ont maintenu les associations de cultures pendant toute la période de suivi. Plus précisément, 102 systèmes avaient trois phases d’adoption, 124 systèmes débutaient leur suivi sans association puis le mettaient en pratique jusqu’à l’arret du suivi, 67 systèmes débutaient leur suivi en ayant des associations et stoppaient la pratique avant la fin du suivi, et 121 systèmes avaient des associations du début à la fin de leur suivi dans le réseau.
Dans 94 des 414 systèmes, les associations de cultures ont été temporairement interrompues avant de reprendre, avec un écart moyen de deux ans, mais ces interruptions n'ont pas été considérées comme un abandon et les systèmes ont été conservés dans l'analyse. Des données sur le statut de certification des exploitations (biologique ou en conversion) étaient également disponibles. Pour les 57 systèmes en conversion vers l’agriculture biologique, nous avons classé le système comme biologique si la majorité des années suivies étaient en bio ou en conversion ; sinon, il était classé comme conventionnel.
Analyse des données
L'ensemble des statistiques et des manipulations de données ont été réalisées avec le logiciel R (version 4.5.2) (R Core Team, 2024). Les statistiques descriptives (caractéristiques des exploitations, composition des associations, adoption et abandon d'espèces) ont été calculées à partir du jeu de données comprenant les 414 systèmes de culture identifiés. Les tests comparant les métriques entre les trois phases d'adoption des associations de cultures (indices de diversité et proportion de familles botaniques) ont été réalisés sur 102 systèmes de culture ayant connu les trois phases, afin de disposer d'un échantillon équilibé et cohérent dans chacune des trois phases.
Description des associations de cultures
Les associations de cultures ont été décrites selon le nombre de familles botaniques qu’elles contenaient. Trois familles majeures ont été considérées (Poacées, Fabacées et Brassicacées), tandis que les familles mineures ont été regroupées sous la catégorie « autres ». Le nombre total et le pourcentage de chaque catégorie d’associations de cultures ont été calculés sur la base de toutes les occurrences dans le jeu de données.
Adoption et abandon d'espèces liées aux associations de cultures
Les différentes associations d'espèces présents dans le jeu de données ont été catégorisées selon l’historique des espèces ajoutées et perdues dans la rotation. Pour les espèces ajoutées, trois catégories ont été définies : 1) toutes les espèces utilisées en associations étaient déjà présentes en culture pure dans le système avant l'adoption des associations de cultures, 2) certaines espèces utilisées en association étaient nouvellement ajoutées, et 3) toutes les espèces utilisées en association étaient nouvellement ajoutées. De même, pour les espèces perdues après l'abandon des associations de cultures, les associations ont été classées en 1) toutes les espèces en mélange continuaient d'être utilisées en culture pure, 2) seules certaines espèces demeuraient, et 3) aucune des espèces ne demeurait. La proportion globale de chaque catégorie a ensuite été calculée pour l'ensemble du jeu de données afin d'identifier les scénarios les plus fréquents.
Évolution de la diversité et de la composition des espèces lors de l'adoption des associations de cultures
Pour chaque année disponible, la richesse spécifique végétale de chaque système de culture a été calculée, ainsi que l'abondance relative de chaque espèce. Pour étudier l'évolution de la composition taxonomique des systèmes de culture au fil du temps, nous avons calculé la proportion annuelle de parcelles par système de culture contenant chacune des trois familles botaniques majeures (Poacées, Fabacées, Brassicacées) ou des familles mineures.
Les changements dans la proportion de chaque famille selon les phases d'adoption des associations de cultures ont été analysés à l'aide d'un modèle linéaire généralisé mixte (GLMM) avec une distribution d'erreur bêta en utilisant le package R glmmTMB (Magnusson et al., 2017). La variable réponse était expliquée par le type d'exploitation (conventionnelle ou biologique) et la phase d'adoption des associations de cultures comme effets fixes, le système de culture était inséré comme effet aléatoire. L'autocorrélation temporelle a également été prise en compte dans le modèle. Les effets des facteurs fixes (type d'exploitation et phase d'adoption) ont été testés à l'aide d'un test de χ² de Wald de type II (package R car (Fox et al., 2012)). Lorsque des effets significatifs étaient détectés, des comparaisons deux à deux ont été effectuées sur la base des moyennes marginales estimées (EMM) à l'aide des packages R emmeans et multcomp (Hothorn et al., 2016 ; Lenth and Lenth, 2018). Un modèle distinct a été construit pour chaque famille botanique.
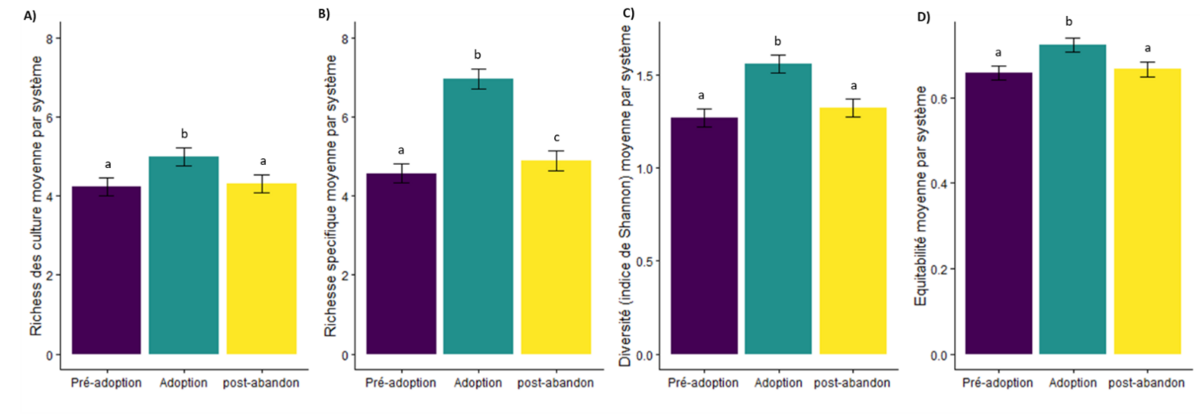
Sur la base de la nature des espèces et des cultures ainsi que des valeurs d'abondance, des indices de diversité ont été calculés. La richesse spécifique (nombre d'espèces individuelles dans le système), la richesse en cultures (dans laquelle les cultures pures ou les mélanges étaient considérés individuellement), la diversité spécifique (indice de Shannon) et l'équitabilité des espèces (1 – indice de Simpson) ont également été calculées par année et par système de culture à l'aide de la fonction diversity() du package R vegan (Oksanen et al., 2013). Chaque indice de diversité a été analysé à l'aide d'un modèle linéaire mixte (LMM) dans lequel la variable réponse était expliquée par deux facteurs fixes : le type d'exploitation (biologique ou conventionnelle) et la phase d'adoption des associations de cultures (pré-adoption, adoption et post-abandon). Le système de culture a été inclus comme effet aléatoire pour tenir compte des mesures répétées dans le temps au sein des systèmes, et l'autocorrélation temporelle entre les années échantillonnées sur une même exploitation a également été prise en compte. Tous les modèles ont été construits à l'aide de la fonction lme() du package R nlme (Pinheiro et al., 2017). Nous avons appliqué les mêmes procédures de test d'hypothèses que celles décrites précédemment.
Résultats & Discussion
Description des systèmes de culture incluant des associations et composition des associations
Sur les 414 systèmes de culture identifiés dans Agrosyst, 171 systèmes, soit 42%, sont des systèmes en agriculture biologique, ce qui est bien supérieur à la moyenne nationale de 14 % des exploitations en 2024 (Agence Bio, 2025). Une précédente étude a également observé une surreprésentation des systèmes biologiques dans l’utilisation d’associations (Yan et al., 2025), ce qui pourrait s'expliquer par l'efficacité des associations de cultures dans les systèmes à faibles intrants et l’utilisation fréquente de méteils en systèmes biologiques. (Bedoussac et al., 2015 ; MacLaren et al., 2022)
Un total de 55 espèces a été recensé dans les associations de cultures, comprenant en moyenne 2,83 espèces (ES ± 0,001) et un maximum de 9 espèces. Les espèces les plus couramment utilisées en mélange étaient le pois (290 et 211 associations recencés en système biologique et conventionnel respectivement), suivi du triticale (231 et 172, respectivement), de la féverole (186 et 155, respectivement), de l'avoine commune (152 et 125, respectivement), de la vesce commune (59 et 130, respectivement), du blé tendre (92 et 64, respectivement), de l'orge (79 et 44, respectivement), du colza (19 et 100, respectivement), et du seigle (36 et 28, respectivement), pour ne citer que les principales.
Les associations de familles botaniques les plus courantes étaient les mélanges Poacée-Fabacée (66 % et 90 % des associations utilisées dans les systèmes conventionnels et biologiques respectivement) (Tableau 1). La forte représentation des mélanges Poacée-Fabacée en agriculture biologique n’est pas surprenant, car les légumineuses fournissent de l'azote au sol, ce qui les rend intéressantes dans ces systèmes, où les engrais de synthèse sont interdits. De plus, même si les légumineuses ont un intérêt agronomique, leur culture en pure peut être difficile en raison de la pression des ravageurs et de la verse (Kontturi et al., 2011).
L'association des légumineuses avec des céréales peut faciliter leur culture par rapport à la culture pure, car les céréales associées peuvent réduire la pression des adventices et l'impact des agents pathogènes, tout en apportant un soutien structurel qui limite la verse (Gu et al., 2021 ; Kontturi et al., 2011).
Dans les systèmes biologiques, les autres associations de familles représentaient moins de 3 % des mélanges, tandis que dans les systèmes conventionnels, l'association Brassicacée-Fabacée représentait tout de même 14 % des mélanges. Les mélanges Brassicacée-Fabacée dans les systèmes conventionnels correspondaient généralement à du colza associé à des « plantes compagnes » telles que la vesce commune, le trèfle, la féverole, le fenugrec ou la lentille. Ce type de mélange est bien établi en France, car les plantes compagnes peuvent protéger le colza contre les ravageurs d'automne, tels que l'altise d'hiver (Psylliodes chrysocephala) ou le charançon du bourgeon terminal (Ceutorhynchus napi) (Magnin et al., 2025 ; Seimandi-Corda et al., 2023), ainsi qu'aider à réduire l'infestation par les adventices (Lorin et al., 2015 ; Verret et al., 2017). En conventionnel le reste des combinaisons de familles était marginalement représenté dans le jeu de données (Tableau 1).
Tableau 1 : Pourcentage (et nombre) de mélanges dans le jeu de données en fonction des familles présentes pour les systèmes en agriculture biologique et conventionnelle. La catégorie « autre » regroupe les familles mineures.
Familles en association | Systèmes en agriculture biologique | Systèmes en agriculture conventionnelle |
Poacée, Brassicacée, Fabacée, autre | 1% (8) | 3% (20) |
Brassicacée, Poacée, autre | 0% (0) | 0% (1) |
Poacée, Brassicacée, Fabacée | 1% (6) | 0% (3) |
Poacée, Fabacée, autre | 1% (8) | 3% (20) |
Brassicacée, Fabacée | 2% (20) | 14% (109) |
Brassicacée, autre | 1% (8) | 1% (5) |
Poacée, Brassicacée | 0% (5) | 1% (4) |
Poacée, Fabacée | 90% (1019) | 66% (502) |
Poacée, autre | 0% (4) | 1% (5) |
Fabacée, autre | 0% (2) | 2% (18) |
Brassicacée | 0% (0) | 0% (0) |
Poacée | 1% (12) | 5% (41) |
Fabacée | 1% (10) | 2% (17) |
autre | 3% (30) | 2% (17) |
La composition en espèces des associations répertoriées dépend probablement de leurs débouchés, qu'il s'agisse d'alimentation humaine, de grains mélangés, d'ensilage fourrager, ou de cultures associées à des plantes compagnes non récoltées, comme cela a pu être montré dans de précédentes études (Lamé et al., 2015 ; Verret et al., 2020). En effet, différentes contraintes s'appliquent selon ces usages. Les grains mélangés devant être triés après récolte pour être commercialisés, les agriculteurs associent souvent des espèces dont les graines ont des tailles différentes afin de faciliter le tri. Ces différences dans l'usage final du produit récolté ont pu influencer les espèces présentes dans les mélanges, mais cette information n'étant pas disponible dans le jeu de données, nous n'avons pas pu inclure la destination du produit comme co-variable dans l'analyse. Cependant, sur la base de l’identité des espèces associées, certains mélanges du jeu de données étaient clairement destinés à l'alimentation animale.
En effet, ces mélanges peuvent être autoconsommés sur l'exploitation pour nourrir les animaux sans avoir à trier les grains, dans les exploitations en polyculture-élevage (Ha et al., 2024).
Évolution de la diversité et de la composition des espèces lors de l'adoption ou de l'abandon des associations de cultures
Dans 86 % des associations de cultures identifiées, les associationss comportaient des espèces qui n'avaient pas été cultivées avant l’adoption de la pratique, et 92 % des systèmes ayant abandonné les associations de culture ont perdu certaines espèces. Plus précisément, 44% des associations identifiées contenaient à la fois des espèces déjà cultivées dans le système et de nouvelles espèces, 42 % contenaient uniquement des espèces entièrement nouvelles, et 15 % contenaient uniquement des espèces déjà cultivées dans le système en culture pure. Après l'abandon des associations de cultures (observé dans 169 des 414 systèmes identifiés), 48 %, 44 % et 10 % des systèmes ont respectivement conservé en culture pure certaines, aucune, ou toutes les espèces cultivées en mélange. Ceci a pour conséquence d’augmenter la diversité des systèmes pendant les phases d’association. Des différences significatives ont été observées pour la richesse en cultures, la richesse spécifique, la diversité (indice de Shannon) et l'équitabilité, avec, dans tous les cas, des valeurs plus élevées pendant la phase d’association que pendant les phases précédentes ou suivantes (Tableau 2, Fig. 1).
Tableau 2 : Résultats des tests χ2 de Wald fais sur les modèles pour tester l’effet du type d’exploitation (conventionnelle ou biologique) et de la phase d’adoption des associations sur différents indices de diversité. * = p < 0.05, ** = p < 0.01, *** p < 0.001, les valeurs en gras sont significatives.
Variable réponse | Variables | χ2 | df | p |
Richesse des cultures | Type exploitation | 3.23 | 1 | 0.072 |
Phase adoption | 73.59 | 2 | < 0.001 *** | |
Richesse spécifique | Type exploitation | 2.02 | 1 | 0.156 |
Phase adoption | 274 | 2 | < 0.001 *** | |
Diversité (indice de Shannon) | Type exploitation | 0.899 | 1 | 0.343 |
Phase adoption | 129.38 | 2 | < 0.001 *** | |
Equitabilité (indice de Simpson) | Type exploitation | 0.367 | 1 | 0.545 |
Phase adoption | 47.47 | 2 | < 0.001 *** |
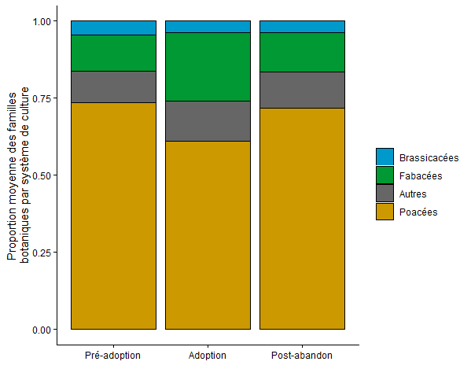
Les espèces les plus couramment ajoutées dans les systèmes de culture suite à l’adoption d’associations de cultures étaient les mêmes que les espèces perdues lors de l’abandon de cette pratique, ce qui suggère que les espèces introduites dans un système de culture lors de l'adoption d’associations de cultures étaient souvent perdues par la suite. Ces espèces ajoutées par les associations étaient des espèces secondaires telles que l'avoine, le triticale, le pois ou la féverole, et de nombreuses cultures mineures, telles que le seigle, l'épeautre, le sarrasin, la lentille et le trèfle. Ce résultat met en évidence que les agriculteurs avaient augmenté la diversité de leur système de culture en introduisant de nouvelles espèces, mais que ces espèces étaient rapidement abandonnées lorsque les associations de cultures étaient elles-mêmes abandonnées. Ce constat souligne ainsi que l’introduction de nouvelles espèces dans les systèmes de culture ne s’accompagnait pas nécessairement de leur maintien dans le temps. Plusieurs facteurs peuvent être susceptibles d’influencer la pérennité de ces nouvelles espèces, notamment les difficultés liées à leur culture, le manque d’habitude ou de connaissances concernant leur gestion, ainsi que les débouchés commerciaux disponibles, comme le suggère la littérature (Meynard et al., 2018). Nous avons observé des différences significatives dans la composition des systèmes de culture, avant, pendant et après l’adoption des associations de cultures, en particulier pour ce qui est de la proportion des différentes familles botaniques (Tableau 4). La proportion de poacées, généralement dominante dans les systèmes, était la plus faible pendant la phase d'adoption en comparaison aux phases pré-adoption et post-abandon (Fig. 2). A l’inverse, la proportion de fabacées était à son pique pendant la phase d'adoption. La proportion des familles mineures augmentait significativement pendant la phase d'adoption, tandis que la proportion de brassicacées était légèrement plus élevée pendant la phase de pré-adoption, puis significativement plus faible pendant la phase post-abandon. Ce résultat est particulièrement intéressant, car l'importance des légumineuses dans les exploitations de grande culture en Europe a diminué au cours des dernières décennies en raison notamment d'un soutien public insuffisant, de la disponibilité d'engrais de synthèse réduisant le besoin de plantes fixatrices d'azote, et de l'utilisation de soja importé d'autres continents dans l'alimentation animale, et de dynamiques de marché favorables aux céréales (Magrini et al., 2016 ; Zander et al., 2016). Par conséquent, les associations de cultures constituent une stratégie efficace pour réintégrer les légumineuses dans les systèmes de culture.
Tableau 4 : Résultats des tests χ2 de Wald fais sur les modèles pour tester l’effet du type d’exploitation (conventionnelle ou biologique) et de la phase d’adoption des associations sur la proportion de différentes familles botaniques dans les systèmes de culture. * = p < 0.05, ** = p < 0.01, *** p < 0.001, les valeurs en gras sont significatives.
Familles botaniques | Variables | χ2 | df | p |
Brassicacées | Type d'exploitation | 8.39 | 1 | 0.004 ** |
Phase d'adoption | 7.67 | 2 | 0.022 * | |
Fabacées | Type d'exploitation | 0.93 | 1 | 0.336 |
Phase d'adoption | 79.75 | 2 | < 0.001 *** | |
autre (familles mineures) | Type d'exploitation | 0.58 | 1 | 0.448 |
Phase d'adoption | 13.63 | 2 | 0.001 ** | |
Poacées | Type d'exploitation | 2.78 | 1 | 0.095 |
Phase d'adoption | 40.57 | 2 | < 0.001 *** |
Conclusion
Cette étude est la première à examiner comment l'adoption et l'abandon des associations de cultures par les agriculteurs modifient la diversité et la composition de leurs systèmes de culture. Les résultats montrent que les agriculteurs français utilisent principalement des mélanges céréales-légumineuses, et que leur adoption augmente significativement la diversité spécifique de leurs systèmes de culture. Cette augmentation était principalement due à l'ajout de nouvelles espèces, souvent des légumineuses, et à la réduction de la proportion de céréales dans les rotations, même lorsque des céréales mineures étaient ajoutées.
L’adoption d’associations de cultures est souvent considérée comme devant s’insérer dans une réflexion de reconfiguration du système de culture pour le rendre plus autonome et résilient, et nécessitant donc des connaissances de la part des agriculteurs pour être mises en œuvre (Duru et al., 2015 ; Leoni et al., 2023). Mais les changements de composition dans les systèmes de culture ayant adopté des associations de culture n'étaient souvent que des ajustements ciblés visant à ajouter des mélanges plutôt que des changements plus profonds. .
Cependant, nous avons observé qu’environ 40% des systèmes étudiés abandonnaient la pratique des associations de culture durant la période de suivi. Ce chiffre est inférieur dans les systèmes en agriculture biologique (36%) par rapport aux systèmes en conventionnel (67%). Cet abandon a pour conséquence de diminuer la diversité des systèmes et de revenir à un état pré-adoption avec une perte des espèces ajoutées. Plusieurs travaux se sont intéressés aux motivations des agriculteurs dans la mise en œuvre d’associations (Bonke and Musshoff, 2020 ; Ha et al., 2024 ; Lemken et al., 2017), mais aucune n'a étudié leur abandon, considéré comme rare (Ha et al., 2024), ce que contredisent les résultats de notre étude. Les associations de cultures sont ainsi liées à une diversification efficace des systèmes de culture, mais les résultats indiquent que le maintien de cette diversité dans le temps ne va pas de soi. Les freins à l'adoption d’associations de cultures ont déjà été identifiés, tels que le manque de conseil technique, la disponibilité limitée de variétés adaptées, des bénéfices économiques insuffisants, et un manque de débouchés pour les grains mélangés. Fournir un conseil technique dédié, encourager les échanges de connaissances entre agriculteurs, soutenir l'investissement dans des équipements adaptés (par exemple, des semoirs capables de semer plusieurs espèces, des trieurs optiques), et mettre en œuvre des politiques publiques ciblées pour faciliter le maintien de cultures mineures dans les rotations pourraient favoriser à la fois l'adoption et le maintien à long terme des associations de cultures et permettre de diversifier les systèmes de culture.
Références bibliographiques
Références bibliographiques
Agence Bio, 2025. Le bio en quelques chiffres. Agence Bio. URL www.agencebio.org/decouvrir-le-bio/le-bio-en-quelques-chiffres/ (accessed 7.31.25).
Agreste [WWW Document], 2023. URL agreste.agriculture.gouv.fr/agreste-web/disaron/Chd2408/detail/ (accessed 6.23.25).
Alletto, L., Vandewalle, A., Debaeke, P., 2022. Crop diversification improves cropping system sustainability: An 8-year on-farm experiment in South-Western France. Agricultural Systems 200, 103433.
Bedoussac, L., Journet, E.-P., Hauggaard-Nielsen, H., Naudin, C., Corre-Hellou, G., Jensen, E.S., Prieur, L., Justes, E., 2015. Ecological principles underlying the increase of productivity achieved by cereal-grain legume intercrops in organic farming. A review. Agron. Sustainable Dev. 35, 911–935. doi.org/10.1007/s13593-014-0277-7
Beillouin, D., Ben‐Ari, T., Malézieux, E., Seufert, V., Makowski, D., 2021. Positive but variable effects of crop diversification on biodiversity and ecosystem services. Global Change Biol 27, 4697–4710. doi.org/10.1111/gcb.15747
Bonke, V., Musshoff, O., 2020. Understanding German farmer’s intention to adopt mixed cropping using the theory of planned behavior. Agron. Sustain. Dev. 40, 48. doi.org/10.1007/s13593-020-00653-0
Curtright, A.J., Tiemann, L.K., 2021. Intercropping increases soil extracellular enzyme activity: a meta-analysis. Agriculture, ecosystems & environment 319, 107489.
Duru, M., Therond, O., Martin, G., Martin-Clouaire, R., Magne, M.-A., Justes, E., Journet, E.-P., Aubertot, J.-N., Savary, S., Bergez, J.-E., Sarthou, J.P., 2015. How to implement biodiversity-based agriculture to enhance ecosystem services: a review. Agron. Sustainable Dev. 35, 1259–1281. doi.org/10.1007/s13593-015-0306-1
Fox, J., Weisberg, S., Adler, D., Bates, D., Baud-Bovy, G., Ellison, S., Firth, D., Friendly, M., Gorjanc, G., Graves, S., 2012. Package ‘car.’ Vienna: R Foundation for Statistical Computing 16, 333.
Gu, C., Bastiaans, L., Anten, N.P.R., Makowski, D., van der Werf, W., 2021. Annual intercropping suppresses weeds: A meta-analysis. Agric. Ecosyst. Environ. 322, 107658. doi.org/10.1016/j.agee.2021.107658
Ha, T.M., Manevska-Tasevska, G., Weih, M., Hansson, H., 2024. Heterogeneity in farmers’ stage of behavioural change in intercropping adoption: an application of the Transtheoretical Model. Agric Econ 12, 12. doi.org/10.1186/s40100-024-00306-w
Hothorn, T., Bretz, F., Westfall, P., Heiberger, R.M., Schuetzenmeister, A., Scheibe, S., Hothorn, M.T., 2016. Package ‘multcomp.’ Simultaneous inference in general parametric models. Project for Statistical Computing, Vienna, Austria 1–36.
Jensen, E.S., Carlsson, G., Hauggaard-Nielsen, H., 2020. Intercropping of grain legumes and cereals improves the use of soil N resources and reduces the requirement for synthetic fertilizer N: A global-scale analysis. Agron. Sustainable Dev. 40, 5. doi.org/10.1007/s13593-020-0607-x
Kontturi, M., Laine, A., Niskanen, M., Hurme, T., Hyövelä, M., Peltonen-Sainio, P., 2011. Pea–oat intercrops to sustain lodging resistance and yield formation in northern European conditions. Acta Agriculturae Scandinavica, Section B - Soil & Plant Science.
Lamé, A., Jeuffroy, M.-H., Pelzer, E., Meynard, J.-M., 2015. Les agriculteurs sources d’innovations : exemple des associations pluri-spécifiques dans le grand Ouest de la France. Agronomie, Environnement & Sociétés 5, 47–54.
Lechenet, M., Makowski, D., Py, G., Munier-Jolain, N., 2016. Profiling farming management strategies with contrasting pesticide use in France. Agricultural Systems 149, 40–53.
Lemken, D., Spiller, A., von Meyer-Höfer, M., 2017. The Case of Legume-Cereal Crop Mixtures in Modern Agriculture and the Transtheoretical Model of Gradual Adoption. Ecological Economics 137, 20–28. doi.org/10.1016/j.ecolecon.2017.02.021
Lenth, R., Lenth, M.R., 2018. Package ‘lsmeans.’ The American Statistician 34, 216–221.
Leoni, F., Carlesi, S., Triacca, A., Koskey, G., Croceri, G., Antichi, D., Moonen, A.-C., 2023. A three-stage approach for co-designing diversified cropping systems with farmers: The case study of lentil-wheat intercropping. Italian Journal of Agronomy 18, 2207.
Lorin, M., Jeuffroy, M.-H., Butier, A., Valantin-Morison, M., 2015. Undersowing winter oilseed rape with frost-sensitive legume living mulches to improve weed control. Eur J Agron 71, 96–105. doi.org/10.1016/j.eja.2015.09.001
MacLaren, C., Mead, A., Van Balen, D., Claessens, L., Etana, A., De Haan, J., Haagsma, W., Jäck, O., Keller, T., Labuschagne, J., Myrbeck, Å., Necpalova, M., Nziguheba, G., Six, J., Strauss, J., Swanepoel, P.A., Thierfelder, C., Topp, C., Tshuma, F., Verstegen, H., Walker, R., Watson, C., Wesselink, M., Storkey, J., 2022. Long-term evidence for ecological intensification as a pathway to sustainable agriculture. Nat Sustain 5, 770–779. doi.org/10.1038/s41893-022-00911-x
Magnin, L., Hiltpold, I., Jullien, A., Baux, A., 2025. Intercropping mitigates incidence of the oilseed rape insect pest complex. Pest Management Science ps.8835. doi.org/10.1002/ps.8835
Magnusson, A., Skaug, H., Nielsen, A., Berg, C., Kristensen, K., Maechler, M., van Bentham, K., Bolker, B., Brooks, M., Brooks, M.M., 2017. Package ‘glmmtmb.’ R Package Version 0.2. 0.
Magrini, M.-B., Anton, M., Cholez, C., Corre-Hellou, G., Duc, G., Jeuffroy, M.-H., Meynard, J.-M., Pelzer, E., Voisin, A.-S., Walrand, S., 2016. Why are grain-legumes rarely present in cropping systems despite their environmental and nutritional benefits? Analyzing lock-in in the French agrifood system. Ecological Economics 126, 152–162.
Mamine, F., Farès, M., 2020. Barriers and Levers to Developing Wheat–Pea Intercropping in Europe: A Review. Sustainability 12, 6962. doi.org/10.3390/su12176962
Meynard, J.-M., Charrier, F., Fares, M., Le Bail, M., Magrini, M.-B., Charlier, A., Messéan, A., 2018. Socio-technical lock-in hinders crop diversification in France. Agron. Sustain. Dev. 38, 54. doi.org/10.1007/s13593-018-0535-1
Morel, K., Revoyron, E., San Cristobal, M., Baret, P.V., 2020. Innovating within or outside dominant food systems? Different challenges for contrasting crop diversification strategies in Europe. PLoS ONE 15, e0229910. doi.org/10.1371/journal.pone.0229910
Oksanen, J., Blanchet, F.G., Kindt, R., Legendre, P., Minchin, P.R., O’hara, R.B., Simpson, G.L., Solymos, P., Stevens, M.H.H., Wagner, H., 2013. Package ‘vegan.’ Community ecology package, version 2, 1–295.
Pinheiro, J., Bates, D., DebRoy, S., Sarkar, D., Heisterkamp, S., Van Willigen, B., Maintainer, R., 2017. Package ‘nlme.’ Linear and nonlinear mixed effects models, version 3, 274.
R Core Team, 2024. R: A Language and Environment for Statistical Computing.
Raseduzzaman, M.D., Jensen, E.S., 2017. Does intercropping enhance yield stability in arable crop production? A meta-analysis. European Journal of Agronomy 91, 25–33.
Seimandi-Corda, G., Winkler, J., Jenkins, T., Kirchner, S., Cook, S., 2023. Companion plants and straw mulch reduce cabbage stem flea beetle (Psylliodes chrysocephala) damage on oilseed rape. Pest Manag Sci accepted.
Tamburini, G., Bommarco, R., Wanger, T.C., Kremen, C., Van Der Heijden, M.G.A., Liebman, M., Hallin, S., 2020. Agricultural diversification promotes multiple ecosystem services without compromising yield. Sci. Adv. 6, eaba1715. doi.org/10.1126/sciadv.aba1715
Verret, V., Gardarin, A., Pelzer, E., Médiène, S., Makowski, D., Valantin-Morison, M., 2017. Can legume companion plants control weeds without decreasing crop yield? A meta-analysis. Field Crop Res 204, 158–168.
Verret, V., Pelzer, E., Bedoussac, L., Jeuffroy, M.-H., 2020. Tracking on-farm innovative practices to support crop mixture design: The case of annual mixtures including a legume crop. European Journal of Agronomy 115, 126018. doi.org/10.1016/j.eja.2020.126018
Yan, E., Martin, P., Carozzi, M., 2025. Main characteristics of French farms adopting cereal–legume intercropping: A quantitative exploration at the national and local levels. Agricultural Systems 223, 104196. doi.org/10.1016/j.agsy.2024.104196
Yan, E., Munier-Jolain, N., Martin, P., Carozzi, M., 2024. Intercropping on French farms: Reducing pesticide and N fertiliser use while maintaining gross margins. European Journal of Agronomy 152, 127036. doi.org/10.1016/j.eja.2023.127036
Yousefi, M., Marja, R., Barmettler, E., Six, J., Dray, A., Ghazoul, J., 2024. The effectiveness of intercropping and agri-environmental schemes on ecosystem service of biological pest control: a meta-analysis. Agron Sustain Dev 44, 15. doi.org/10.1007/s13593-024-00947-7
Zander, P., Amjath-Babu, T.S., Preissel, S., Reckling, M., Bues, A., Schläfke, N., Kuhlman, T., Bachinger, J., Uthes, S., Stoddard, F., Murphy-Bokern, D., Watson, C., 2016. Grain legume decline and potential recovery in European agriculture: a review. Agron. Sustain. Dev. 36, 26. doi.org/10.1007/s13593-016-0365-y
Zhang, Y., Bohan, D.A., Zhang, C., Cong, W.-F., Munier-Jolain, N., Bedoussac, L., 2025. Crop diversity reduces pesticide use more efficiently with refined diversification strategies. Commun Earth Environ 6, 460. doi.org/10.1038/s43247-025-02418-7
Les articles sont publiés sous la licence Creative Commons (CC BY-NC-ND 2.0)
Pour la citation et la reproduction de cet article, mentionner obligatoirement le titre de l'article, le nom de tous les auteurs, la mention de sa publication dans la revue AES et de son URL, la date de publication.